RÉSUMÉ
La célébration du centenaire de la première description de la maladie de von Willebrand offre une excellente occasion de présenter les progrès scientifiques réalisés concernant les principes fondamentaux de la protéine qui est absente ou dysfonctionnelle dans cette maladie : le facteur von Willebrand (VWF). Alors que des études cliniques ont confirmé que le VWF joue un rôle central en hémostase, des travaux fondamentaux ont permis de mieux comprendre sa structure et ses fonctions. Le mot « fonctions » est utilisé délibérément au pluriel, car nous avons pris conscience que le VWF est bien plus qu’une simple protéine hémostatique. Sa structure, composée de multiples domaines, chacun adapté à une fonction spécifique, permet au VWF de participer à divers processus physiologiques et physiopathologiques. Nous présentons ici un bref résumé de nos connaissances actuelles sur le VWF et ses fonctions dans le cadre de l’hémostase et au-delàMOTS CLÉS
facteur von Willebrand, hémostase, thrombose
ABSTRACT
Celebrating the centenary of the first description of von Willebrand disease offers an excellent opportunity to describe the scientific progress that has made on the fundamentals of the protein that is absent or dysfunctional in this disease: von Willebrand factor (VWF). While clinical studies confirmed that VWF is pivotal to the hemostatic system, basic studies have provided insights into its structure and functions. The word “functions” is used deliberately in plural, as we have become aware that VWF is more than just a hemostatic protein. Its structure consisting of multiple domains, each adapted to serve a specific function, allows VWF to participate in a variety of physiological and pathophysiological processes. Here, we present a brief summary of our current knowledge of VWF and its functions within and beyond hemostasis.
KEYWORDS
hemostasis, thrombosis, Von Willebrand factor
INTRODUCTION
Le facteur von Willebrand (VWF) est une protéine plasmatique qui circule sous forme d’un ensemble de multimères dont le poids moléculaire peut dépasser les dix millions de daltons. Sa taille inhabituellement importante confère au VWF un certain nombre de propriétés uniques. Premièrement, cette grande taille le rend très sensible aux changements conformationnels induits par les forces hémodynamiques. Deuxièmement, sa structure, constituée de multiples domaines, permet des interactions avec un large éventail de ligands. Le VWF est principalement connu pour son rôle en hémostase, en agissant comme protéine chaperonne du facteur VIII de la coagulation (FVIII) et en contribuant au recrutement des plaquettes lors de la formation d’un thrombus. Cependant, de plus en plus de données indiquent que le VWF joue également un rôle dans d’autres processus physiopathologiques, notamment l’inflammation, l’angiogenèse et les métastases cancéreuses (Figure 1). Dans cette revue, nous mettrons en lumière divers aspects biologiques de cette protéine fascinante.
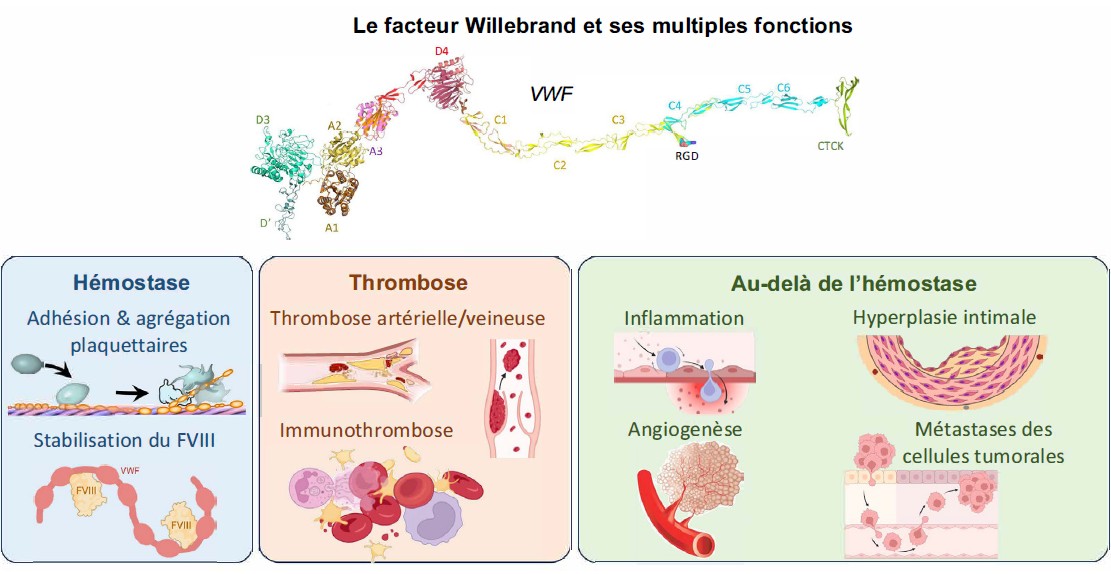
Figure 1 : La diversité fonctionnelle du VWF.
Figure 1: The functional diversity of VWF.
Le VWF est surtout connu pour son rôle dans l’hémostase. Cependant, on sait aujourd’hui que ses fonctions vont au-delà de l’hémostase, puisqu’il joue un rôle important dans divers processus physiopathologiques, notamment l’inflammation, la prolifération des cellules musculaires lisses, l’angiogenèse et les métastases cancéreuses.
SYNTHÈSE DU VWF
Le VWF est synthétisé dans les cellules endothéliales et les mégacaryocytes, où il est stocké respectivement dans les corps de Weibel-Palade (WPB) et les granules α des plaquettes (1). Au niveau protéique, le VWF présente une structure en domaines spécifiques, organisés selon la séquence D1-D2-D’-D3-A1-A2-A3-D4-C1-C2-C3-C4-C5-C6-CK. Les domaines D1-D2 correspondent au propeptide, et les domaines restants à la sous-unité mature du VWF (2). Bien qu’initialement produit sous forme de polypeptide à chaîne unique, une succession d’étapes permet au VWF d’être converti en une protéine multimérique de taille hétérogène. Les sous-unités du VWF se dimérisent par le biais de ponts disulfure intermoléculaires situés dans le domaine CK, C-terminal. Par la suite, des multimères de VWF sont générés par la formation de ponts disulfure entre les domaines D3. Ce processus est médié par le propeptide, qui est ensuite séparé par protéolyse de la sous-unité mature du VWF (1).
Dans les cellules endothéliales, les multimères de VWF fusionnent pour former l’architecture des WPB, granules de stockage spécifiques du compartiment endothélial. Lors de la stimulation des cellules endothéliales, le contenu des WPB est libéré, entraînant la formation de longues chaînes de VWF, composées de multimères de VWF associés entre eux. Ces chaînes ultra-longues de VWF restent associées à la cellule endothéliale et sont capables de recruter spontanément des plaquettes. Ce n’est qu’après avoir subi une protéolyse par l’ADAMTS13 (a disintegrin and metalloprotease with thrombospondin type I repeats-13) que ces multimères ultra-longs de VWF sont transformés en multimères de taille normale, qui sont libérés dans le plasma et adoptent une conformation globulaire qui ne peut pas se lier aux plaquettes. Par contraste avec cette sécrétion régulée, le VWF sécrété de manière constitutive ne comporte pas de multimères ultra-longs (1).
LES RÔLES HÉMOSTATIQUES
Dans le cadre du processus hémostatique, le VWF joue un double rôle. Tout d’abord, le VWF est essentiel au recrutement des plaquettes aux sites de lésion vasculaire, une fonction régulée par des changements conformationnels au sein de sa structure multimérique (2). Le VWF circule sous une conformation globulaire qui ne lui permet pas d’interagir avec les plaquettes. En cas de lésion vasculaire, le VWF en circulation adhère par l’intermédiaire de ses domaines A1 et A3 à la matrice de collagène sous-endothéliale. Les forces hémodynamiques entraînent alors la transition du VWF de sa forme globulaire vers une structure allongée, ce qui expose un site d’interaction sur son domaine A1 pour le récepteur GPIb-V-IX plaquettaire. Le VWF ainsi étiré sert de substrat d’adhésion pour les plaquettes. La capacité à recruter les plaquettes dépend strictement de la taille des multimères, les multimères de plus grande taille étant plus efficaces. Outre le complexe GPIb-IX-V, le VWF utilise également son motif Arg-Gly-Asp (situé dans le domaine C4) pour interagir avec l’intégrine αIIbβ3 des plaquettes. Cette interaction contribue à la stabilisation des thrombi riches en plaquettes. Une deuxième fonction hémostatique importante du VWF concerne son interaction avec le FVIII, qui agit comme un cofacteur non enzymatique au sein du complexe ténase (3).
Le FVIII est une protéine instable qui est non seulement sensible à la dégradation protéolytique, mais qui est également sujette à une élimination rapide via des récepteurs de clairance. L’assemblage d’un complexe FVIII/VWF (le site de liaison du FVIII étant situé dans la région D’D3 du VWF) est donc une étape cruciale pour maintenir des taux plasmatiques appropriés de FVIII. En effet, lorsqu’il est lié au VWF, la demi-vie du FVIII est fortement prolongée, passant de 2 heures à 12-15 heures.
VWF ET THROMBOSE ARTÉRIELLE
Alors qu’un dysfonctionnement ou un déficit en VWF est associé à une diathèse hémorragique, des taux élevés de VWF se sont révélés être un facteur de risque de thrombose (4). En effet, des études épidémiologiques ont systématiquement mis en évidence une corrélation entre des taux élevés de VWF et l’augmentation du risque de premier épisode ou de récidive d’accident vasculaire cérébral ischémique, ainsi que d’infarctus du myocarde. De nombreux modèles animaux de thrombose artérielle ont confirmé ce lien et ont montré comment l’absence de VWF (grâce à l’utilisation de souris déficientes en VWF notamment) est protectrice, permettant d’éviter la formation de thrombi occlusifs dans la micro- et la macrocirculation.
VWF ET LA THROMBOSE VEINEUSE
Alors que le VWF a longtemps été associé à la thrombose artérielle, de nouvelles études épidémiologiques associent également des concentrations plasmatiques élevées de VWF à un risque accru de maladie thromboembolique veineuse (MTEV). Une telle corrélation a d’abord été attribuée à l’augmentation concomitante des taux de FVIII. Cependant, des études plus récentes ont permis de dissocier l’effet du VWF et du FVIII, et ont mis en évidence un rôle causal des taux plasmatiques de VWF sur le risque de MTEV. Une implication directe du VWF dans la MTEV a ensuite été confirmée par des analyses immunohistologiques de thrombi veineux (provenant de patients et de souris), dans lesquelles le VWF a été directement visualisé. De plus, des études in vivo ont démontré qu’un déficit en VWF protégeait contre le développement de la thrombose veineuse. Le mécanisme par lequel le VWF contribue à la MTEV n’est pas encore totalement élucidé, mais pourrait être lié à des conditions inflammatoires locales et/ou à une perturbation de la circulation sanguine à proximité des valves veineuses.
LE VWF ET L’IMMUNOTHROMBOSE
Les états inflammatoires systémiques, tels que la septicémie bactérienne et les coagulopathies virales, entraînent l’activation des cellules endothéliales et, par conséquent, la libération de chaînes de VWF de très grande taille, capables d’interagir spontanément avec les plaquettes et les leucocytes. Simultanément, l’état inflammatoire génère des neutrophiles activés qui subissent une NETose, libérant des pièges extracellulaires neutrophiliques (NETs) composés d’ADN acellulaire et d’histones citrullinées. Le VWF se lie directement à ces NETs, formant un réseau physique qui peut non seulement piéger les leucocytes, les globules rouges et les plaquettes, mais aussi fournir une plateforme pour amplifier la génération de thrombine. Il est important de noter que, parallèlement à l’augmentation des taux de VWF dans des conditions inflammatoires, les taux d’ADAMTS13 sont souvent réduits. Un tel déséquilibre du ratio VWF/ADAMTS13 limite d’autant plus la régulation de la taille des multimères ultra-larges du VWF, amplifiant encore davantage l’état prothrombotique.
LE VWF ET LE PURPURA THROMBOTIQUE THROMBOCYTOPÉNIQUE
La régulation de la taille des multimères du VWF doit être strictement contrôlée : si les multimères sont trop longs, ils peuvent devenir prothrombotiques en formant des complexes VWF/plaquettes circulants, tandis que les multimères trop courts sont inefficaces sur le plan émostatique et peuvent être associés à un risque accru d’hémorragie.
Une fois en circulation, la taille des multimères du VWF est régulée par la métalloprotéase ADAMTS13. Ce couple enzyme/substrat est quelque peu unique en ce sens que l’enzyme est constitutivement active, tandis que son site protéolytique cible est inaccessible au sein de la structure globulaire du VWF (5). Ce n’est que dans des conditions de contraintes de cisaillement accrues, lorsque le VWF se déplie pour adopter sa conformation de liaison aux plaquettes, que le site de clivage au sein du domaine A2 du VWF devient accessible à l’ADAMTS13. Le fait que l’absence d’activité d’ADAMTS13 soit associée à de graves complications thrombotiques connues sous le nom de purpura thrombotique thrombocytopénique (PTT) illustre l’importance physiologique de la régulation de la taille des multimères du VWF par cette enzyme. Le PTT se caractérise par l’obstruction des microvaisseaux par des thrombi riches en VWF et en plaquettes, entraînant une anémie hémolytique mécanique et une défaillance multiviscérale d’origine ischémique.
LE VWF AU-DELÀ DE L’HÉMOSTASE
L’inflammation
Le VWF et son propeptide sont des biomarqueurs cliniques reconnus des affections inflammatoires (6). Cependant, les travaux de la dernière décennie démontrent que le VWF régule directement ces réponses, liant l’hémostase à l’immunité innée. in vivo, le VWF contrôle la perméabilité vasculaire et l’extravasation leucocytaire. Chez les souris présentant un déficit en VWF ou une inhibition de son action, le recrutement des neutrophiles est considérablement réduit dans divers modèles inflammatoires (7,8).
Ce rôle pro-inflammatoire repose sur plusieurs processus complexes : i) le VWF est essentiel à la formation des WPB alors que ces granules endothéliaux renferment de nombreuses protéines inflammatoires, dont la P-sélectine, l’interleukine-8 et l’éotaxine-3, libérées lors de l’activation endothéliale ; ii) le VWF libéré recrute directement les leucocytes polymorphonucléaires (PMN). En effet, le VWF peut interagir avec différents écepteurs leucocytaires dont le PSGL-1, les intégrines β2 et le récepteur neutrophilique Slc44a2 ; iii) le VWF se lie aux macrophages résidents via le récepteur de clairance LRP-1. Cette interaction active les voies de signalisation p38MAPK et NF-ĸB, orientant les macrophages vers un phénotype glycolytique M1 pro-inflammatoire et sécréteur de cytokines ; iv) par l’intermédiaire de son domaine A1, le VWF se lie directement aux histones et à l’ADN extracellulaire des NETs favorisant le recrutement leucocytaire ; v) le VWF influence le complément : il se lie au facteur H (inhibant le clivage du VWF par l’ADAMTS13), interagit avec les sous-unités C1q, C3 et C3b, et agit comme cofacteur pour le clivage de C3b médié par le facteur I ; vi) le VWF module aussi l’immunité adaptative en interagissant avec les cellules dendritiques.
Prolifération des cellules musculaires lisses
Dans certaines conditions pathologiques telles que l’athérosclérose, le VWF est identifié comme une des protéines qui s’accumulent dans l’espace extravasculaire entre les cellules musculaires lisses (CML) néointimales. Des études in vivo ont révélé que le remodelage vasculaire et la formation d’une néointima après ligature carotidienne sont quasi absents chez les souris déficientes en VWF, suggérant que la protéine module la prolifération et la migration des CML (9). Ce rôle est confirmé in vitro, où le VWF s’avère aussi efficace que le facteur de croissance dérivé des plaquettes (PDGF) pour stimuler la prolifération cellulaire. Ce mécanisme moléculaire implique la liaison du domaine A2 du VWF au récepteur LRP4, associé à l’intégrine αVβ3 à la surface des CML, activant ainsi une voie de signalisation dépendante de la p38MAPK (9).
Angiogenèse et cicatrisation
De nombreuses données démontrent que le VWF joue un rôle principalement inhibiteur dans la régulation de l’angiogenèse (10). Cliniquement, son déficit est associé à des angiodysplasies gastro-intestinales. in vivo, les souris déficientes en VWF présentent un lit vasculaire anormal, observations confirmées in vitro par une capacité angiogénique anormale des cellules endothéliales isolées à partir de patients atteints de maladie de Willebrand.
Le VWF module l’angiogenèse via deux voies distinctes non mutuellement exclusives. D’une part, il influence la biodistribution de l’angiopoïétine-2. Cette molécule anti-angiogénique est localisée dans les WPB et est sécrétée avec le VWF. En l’absence de VWF, sa distribution est perturbée, provoquant sa liaison excessive au récepteur endothélial Tie-2, ce qui déstabilise les vaisseaux et induit la formation de nouveaux capillaires. D’autre part, la liaison du VWF à l’intégrine endothéliale αVβ3 inhibe l’expression du VEGFR2 (vascular endothelial growth factor receptor 2), et donc en absence de VWF, l’activité accrue du VEGFR2 entraîne une hyperprolifération endothéliale (10).
À l’opposé de ces observations, le VWF favorise la cicatrisation cutanée en agissant comme molécule chaperonne pour plusieurs facteurs proangiogéniques, notamment le VEGF-A, le facteur de croissance placentaire (PlGF) et le facteur de croissance basique des fibroblastes (bFGF). Ces facteurs se lient au niveau du domaine A1 du VWF, permettant leur acheminement ciblé vers le site de la lésion.
Ainsi, selon le microenvironnement local, le VWF exerce un effet ambivalent, anti- ou proangiogénique.
Biologie tumorale et métastases
Des observations cliniques indiquent que des concentrations élevées de VWF constituent un biomarqueur de mauvais pronostic associé à la progression tumorale, un effet encore amplifié au stade métastatique (11). Au-delà de ce rôle de biomarqueur, la question s’est donc posée de savoir si le VWF pouvait jouer un rôle actif dans la régulation de la progression tumorale. L’un des mécanismes par lesquels le VWF est susceptible de favoriser les métastases tumorales est basé sur sa capacité à lier les cellules tumorales aux plaquettes et aux cellules endothéliales, facilitant ainsi leur extravasation.
Alternativement, la liaison du VWF aux cellules tumorales pourrait également avoir l’effet inverse, en induisant l’apoptose de ces cellules. De manière tout à fait intrigante, les deux effets ont été démontrés dans des expériences in vivo et in vitro. Le VWF semble donc influencer de multiples aspects de la biologie des cellules cancéreuses, mais des études additionnelles sont nécessaires pour comprendre les conditions dans lesquelles il peut jouer un rôle délétère ou, au contraire, protecteur.
CONCLUSION
Cent ans après la description de la maladie de Willebrand et un demi-siècle après la découverte du VWF en tant que protéine multimérique distincte du FVIII, cette protéine intrigante ne cesse de nous surprendre. Outre sa structure unique qui lui permet d’interagir avec une ultitude d’autres protéines et son rôle clé dans l’hémostase, c’est également sa polyvalence dans divers processus physiologiques et pathologiques qui distingue cette protéine de la plupart des autres membres de notre protéome. Il reste toutefois de nombreuses pistes à explorer concernant la biologie et la fonction du VWF, et la combinaison des données issues des études cliniques et fondamentales sera déterminante pour approfondir nos connaissances sur le VWF. Cette approche translationnelle mènera sans aucun doute à de nouvelles stratégies thérapeutiques visant à moduler sélectivement les fonctions pathologiques du VWF.
Points clés à retenir
• Le VWF est une protéine multimérique dotée d’une structure complexe.
• Sa structure unique permet au VWF d’interagir de manière régulée avec de nombreux ligands.
• Ses principales fonctions sont liées à l’hémostase : recrutement des plaquettes, stabilisation des thrombi riches en plaquettes et protection du FVIII contre une élimination prématurée.
• Le VWF joue également un rôle au-delà de l’hémostase, notamment dans l’inflammation, l’angiogenèse,
l’hyperplasie intimale et la biologie des cellules tumorales.
